
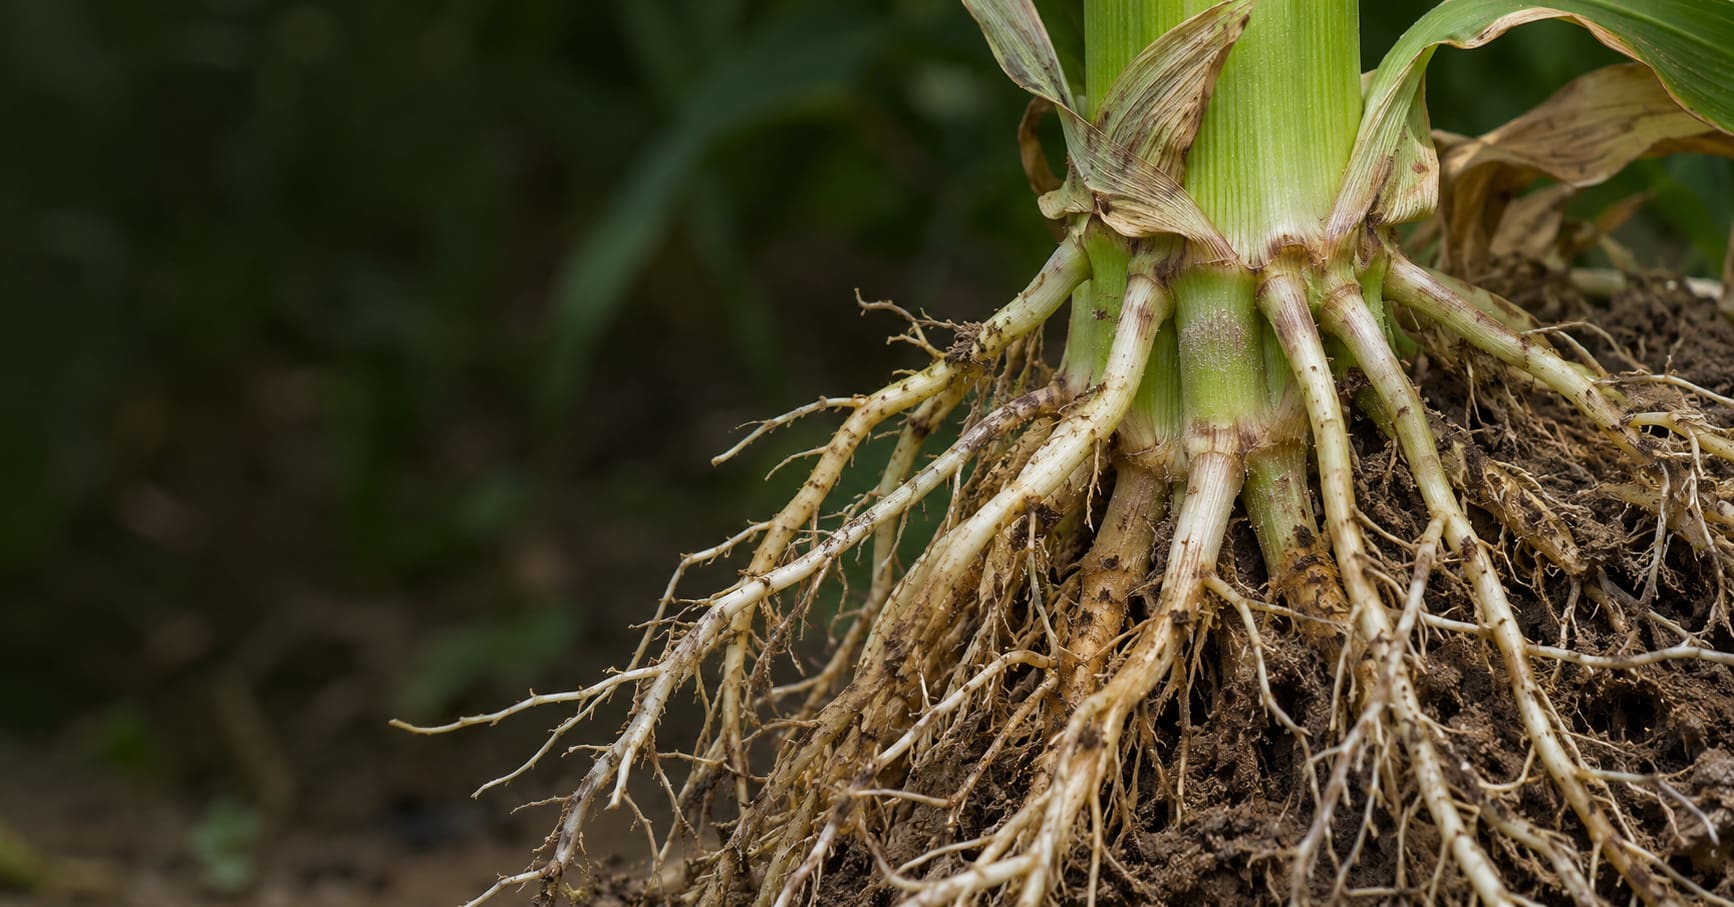
Saengwilai et al. (2014) compararam linhagens de milho em mesocosmos, aos 35 dias após o plantio, sob baixo nitrogênio. As linhagens com mais lacunas gasosas no córtex da raiz tiveram respiração radicular 42% menor por unidade de comprimento.
O comprimento total de raízes foi 35% maior nesse grupo. Essas lacunas formam o aerênquima cortical do milho, estrutura em que células vivas do córtex radicular são substituídas por espaços com gás.
A raiz recebe carbono produzido nas folhas e gasta energia para manter suas células vivas. Duas plantas com o mesmo comprimento de raízes podem ter custos de manutenção diferentes. O aerênquima altera esse custo ao reduzir o tecido vivo por centímetro de raiz.
A falta de nitrogênio aumentou o aerênquima em 200% nos mesocosmos e em 90% a 100% no campo, segundo Saengwilai et al. (2014). Os campos ficavam na Pensilvânia (Estados Unidos) e em Limpopo (África do Sul).
Segundo Saengwilai et al. (2014), nas linhagens com mais aerênquima a profundidade das raízes foi 15% maior em mesocosmos e 31% maior no campo sul-africano.
Este artigo descreve a anatomia do aerênquima e seu efeito sobre a respiração e o crescimento da raiz. A seguir, estão as evidências sob baixo nitrogênio, seca e baixo fósforo, além dos limites de interpretação. Você encontra ainda critérios para avaliar raízes em ensaios.
Aerênquima cortical do milho e o custo de manter a raiz
Onde as lacunas se formam na raiz
A extensão visível de uma raiz informa até onde o eixo chegou. A quantidade de laterais descreve a ramificação, e o diâmetro e a massa acrescentam outras informações. Nenhuma dessas medidas mostra como o tecido está organizado por dentro.
Em um corte transversal de raiz jovem de milho, aparecem os tecidos externos, o córtex e o cilindro vascular central. O córtex ocupa o espaço entre os tecidos periféricos e a endoderme, que delimita o cilindro vascular. Os tecidos condutores ficam nesse cilindro.
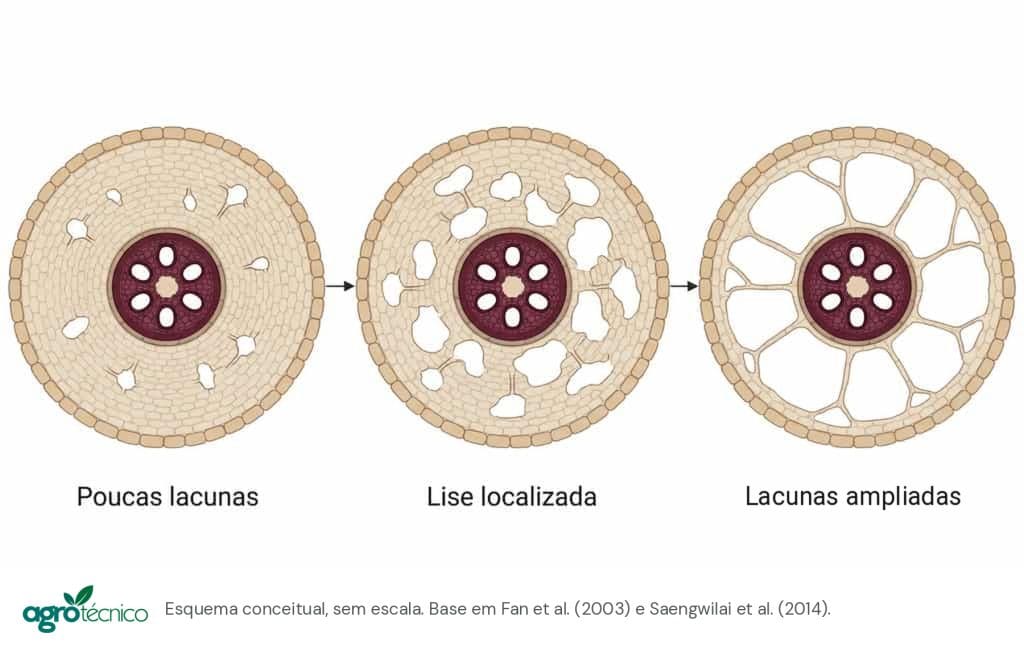
Segundo Fan et al. (2003), o aerênquima cortical do milho se forma por morte e lise de células do córtex, processo chamado formação lisígena. Permanecem tecidos entre as lacunas e ao redor delas. A mudança anatômica fica restrita ao córtex.
Esse processo difere do apodrecimento causado por patógeno e atinge apenas parte do córtex.
O esquema da Figura 1 mostra três estágios de formação de lacunas no córtex, com o cilindro vascular no centro.
A Figura 2, de Yan et al. (2026), mostra o tecido observado ao microscópio e permite comparar com o esquema.
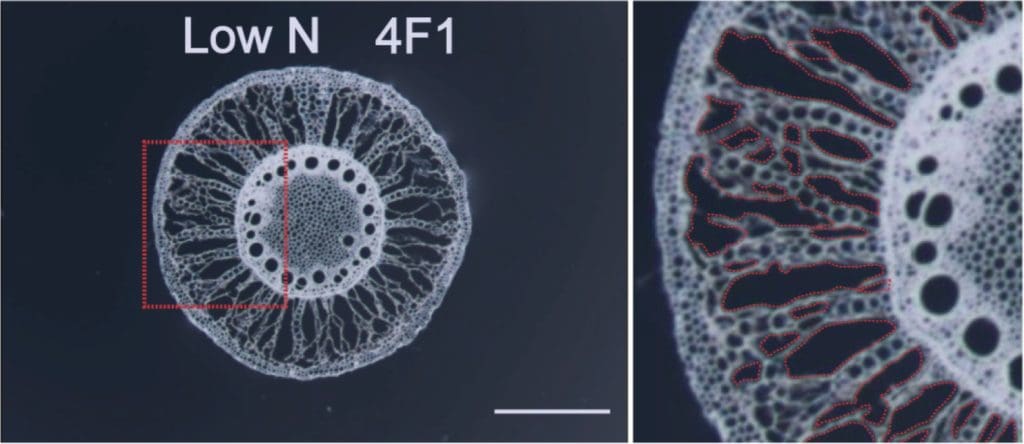
Desenhar a raiz como uma mangueira oca induz ao erro. Nesse desenho, a planta parece ter eliminado a conexão de transporte. Na raiz real, espaços gasosos substituem parte do córtex vivo e o cilindro vascular pode permanecer.
Lacunas corticais e cavitação do xilema são fenômenos diferentes, em estruturas diferentes. A cavitação interrompe a coluna de água nos vasos condutores, enquanto as lacunas ocorrem no córtex.
Custo de construção e de manutenção da raiz
Construir uma raiz e mantê-la funcionando geram gastos diferentes. Na construção, a planta investe recursos na formação das células e de suas estruturas. Na manutenção, ocorrem processos que continuam no tecido vivo mesmo quando o segmento já não se alonga.
A respiração usa compostos orgânicos e fornece energia ao metabolismo. A manutenção de membranas, de gradientes iônicos e de componentes celulares participa dessa demanda. Absorção e transporte têm custos próprios.
Menor respiração não elimina o gasto com absorção e transporte, e o gasto total da planta não diminui na mesma proporção.
Em raízes seminais, Fan et al. (2003) encontraram que 20% da área cortical ocupada por aerênquima reduziu em 50% a respiração do segmento. Saengwilai et al. (2014) esperam que raízes coroa, com mais tecido vivo, precisem de mais aerênquima para reduzir a respiração pela metade.
Na interpretação de uma medição, o denominador faz diferença. A respiração de um sistema radicular inteiro pode ser maior simplesmente porque ele é mais longo.
A respiração por unidade de massa responde a outra pergunta, e a respiração por unidade de comprimento indica quanto custa manter determinada extensão de raiz.
Em uma comparação hipotética, uma planta mantém um sistema curto com alto gasto por centímetro. Outra mantém um sistema mais longo com menor gasto por centímetro. A emissão total de dióxido de carbono não indica sozinha qual delas explora o solo com menor custo relativo.
A comparação exige relacionar a respiração ao tamanho do sistema e verificar o que essa exploração entrega à planta.
O raciocínio inverso requer atenção. Uma raiz danificada pode ter baixa atividade respiratória. Esse menor consumo difere do menor custo associado a uma característica anatômica adaptativa. O significado da medida depende da integridade do tecido, da condição experimental e da resposta da planta inteira.
Efeito do aerênquima sobre a respiração e o crescimento da raiz
O que as lacunas mudam no balanço da planta
Quando o córtex deixa de ser ocupado por células vivas em parte da área, diminui o tecido que a planta precisa sustentar naquele segmento. A relação entre tecido vivo e comprimento muda, e o eixo radicular permanece.
O custo nutricional também integra a questão. As células contêm nutrientes, e a redução da fração viva altera o investimento associado à estrutura.
Fan et al. (2003) investigaram as relações entre aerênquima, respiração e fósforo nos tecidos. Os resultados sustentam a interpretação de que a anatomia altera os requisitos respiratórios e nutricionais da exploração do solo.
Sob baixo nitrogênio, Saengwilai et al. (2014) encontraram correlação negativa entre o aerênquima e o teor de nitrogênio do tecido radicular. Segundo os autores, o nitrogênio do tecido lisado pode ser reabsorvido e usado no crescimento da planta.
A célula perdida não gera crédito de carbono transferido automaticamente a uma nova raiz. Os recursos se distribuem pela planta inteira, e folhas, raízes em crescimento e estruturas reprodutivas integram o mesmo sistema. A economia de carbono depende das demais limitações e demandas da planta.
Por isso, o menor custo pode permitir a manutenção ou a ampliação da exploração do solo. Se uma restrição física severa impede o avanço das raízes, reduzir o custo de manutenção não resolve o problema. O mesmo vale quando o recurso procurado está indisponível.
A compactação do solo no Cerrado é um exemplo de restrição física que limita o crescimento da raiz da soja.
A eficiência da raiz resulta da relação entre estrutura viva, extensão radicular e aquisição de recursos. Nenhum atributo isolado, levado ao extremo, produz esse resultado.
Resultados sob baixo nitrogênio
Saengwilai et al. (2014) compararam linhagens de milho contrastantes em aerênquima sob diferentes disponibilidades de nitrogênio, em mesocosmos e em campo. Os mesocosmos reúnem plantas em volumes de solo sob condições controladas e não reproduzem todas as características de uma lavoura.
Os mesocosmos ficavam em estufa na Universidade Estadual da Pensilvânia. O campo africano ficava em Limpopo e o norte-americano em Rock Springs, na Pensilvânia.
No experimento em mesocosmos de 2010, o grupo com mais aerênquima teve 42% menos respiração por unidade de comprimento. A medição ocorreu aos 35 dias após o plantio, sob baixo nitrogênio. O comprimento radicular total foi 35% maior nesse grupo.
No experimento de 2010, o aerênquima ocupou em média 18% da área cortical no grupo com mais aerênquima e 5% no grupo com menos. Segundo Saengwilai et al. (2014), a massa da parte aérea foi 66% maior no primeiro grupo aos 35 dias.
Esses percentuais não são coeficientes para prever o desempenho de um híbrido comercial. Os grupos eram geneticamente distintos, e a comparação difere de alterar apenas o aerênquima em plantas idênticas.
Os autores usaram linhagens recombinantes derivadas dos mesmos genitores, escolhidas por terem características radiculares comuns, exceto o aerênquima. O conjunto dos resultados é compatível com o mecanismo proposto. Os números pertencem ao experimento e às condições em que foram obtidos.
Um índice relativo, com o grupo de referência igual a 100, mostra a diferença proporcional. Ele não mede a respiração absoluta, e a legenda de uma figura deve informar essa condição.
Profundidade de raízes, água e nitrato
Profundidade de enraizamento e acesso aos recursos
A utilidade de uma raiz depende de onde ela está em relação ao recurso. Um sistema volumoso concentrado em região já explorada difere de outro que alcança camada com água disponível. O mesmo vale para nutrientes distribuídos de forma variável no perfil.
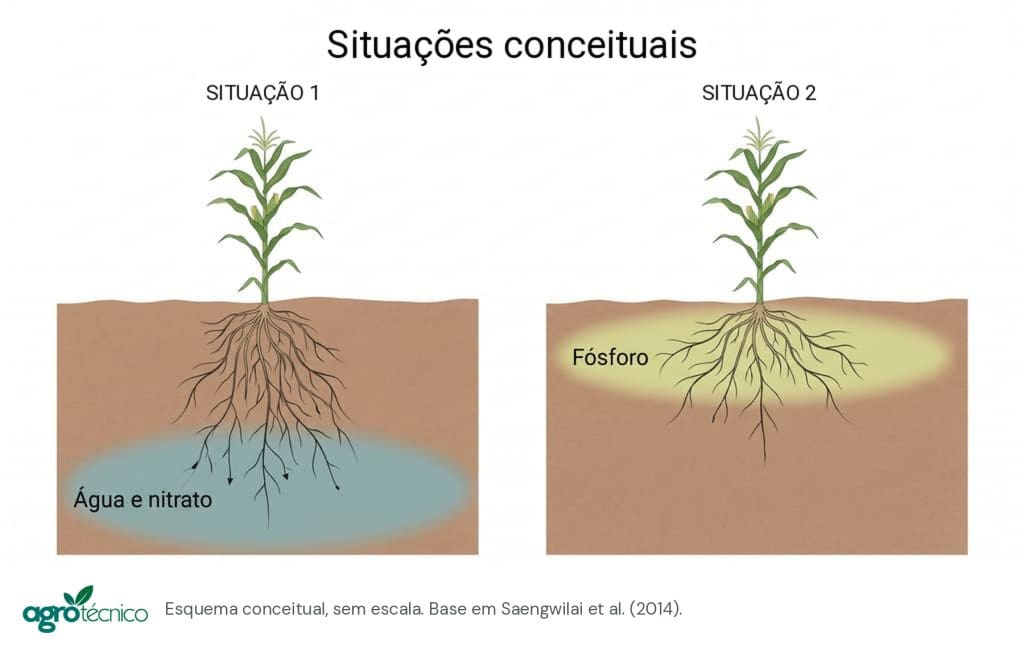
De acordo com Saengwilai et al. (2014), o nitrato é solúvel e móvel no solo. O enraizamento profundo permite captá-lo antes que ele seja lixiviado abaixo da zona radicular.
A distribuição da água no perfil muda durante o ciclo, conforme a chuva, a extração pelas plantas e as propriedades do solo. A profundidade tem importância diferente em momentos distintos.
A profundidade de enraizamento foi medida como D95, a profundidade acima da qual está 95% do comprimento radicular. Sob baixo nitrogênio, o D95 foi 15% maior nos mesocosmos e 31% maior no campo de Limpopo para as linhagens com mais aerênquima.
Segundo os autores, a maior vantagem em Limpopo, de solo arenoso, pode decorrer da lixiviação mais rápida do nitrato. Na floração, a massa da parte aérea foi 52% maior em Limpopo e 31% maior em Rock Springs nas linhagens com mais aerênquima.
A interpretação agronômica combina três informações. A primeira é a existência de recurso em determinada camada. A segunda é a chegada das raízes a essa camada. A terceira é o efeito desse acesso sobre o funcionamento da planta.
Observar apenas a segunda deixa a explicação incompleta. A profundidade indica oportunidade de acesso e difere de uma medida direta de absorção. Essa distinção ajuda a avaliar afirmações sobre raízes “mais profundas”.
Sem conhecer o solo, não se sabe qual vantagem essa distribuição oferece. Uma camada pode estar seca, ter limitação química ou alta resistência ao crescimento. Em outra situação, a mesma profundidade dá acesso a uma reserva de água.
As duas situações conceituais da Figura 3 mostram onde cada recurso pode estar no perfil do solo.
O menor custo metabólico interessa porque pode viabilizar a exploração do solo. Ele não substitui a análise do perfil. Para você, que avalia lavouras ou ensaios, o ganho está em tratar comprimento, profundidade e disponibilidade de recurso como variáveis relacionadas.
Experimentos sob seca
Zhu, Brown e Lynch (2010) estudaram linhagens de milho contrastantes em aerênquima sob restrição hídrica, em campo e em mesocosmos. Nas linhagens com mais aerênquima, o conteúdo relativo de água das folhas ao meio-dia foi 10% maior sob déficit hídrico.
Sob déficit hídrico, essas linhagens tiveram produtividade média oito vezes maior que a das linhagens com menos aerênquima. Nos mesocosmos, elas tiveram menor respiração de raízes seminais, enraizamento mais profundo e maior biomassa da parte aérea.
A comparação ocorreu entre linhagens aparentadas, e a razão de oito vezes pertence a esse conjunto de linhagens e à condição de estresse avaliada.
Zhu, Brown e Lynch (2010) ligam uma característica vista em cortes de raiz a variáveis do sistema radicular e da planta. Essa ligação sustenta a hipótese de que reduzir o custo da exploração favorece a adaptação à seca.
Chimungu et al. (2015) avaliaram 40 acessos de milho coletados no Malawi em condições de sequeiro. Um subgrupo contrastante em aerênquima foi cultivado sob déficit hídrico em duas estações de pesquisa e em propriedades rurais sob seca natural.
Sob déficit hídrico, os genótipos com mais aerênquima tiveram conteúdo relativo de água nas folhas 23% a 29% maior. A produtividade de grãos foi 78% a 143% maior.
Os estudos de Saengwilai et al. (2014) e Chimungu et al. (2015) ocorreram nos Estados Unidos, na África do Sul e no Malawi. Nenhum deles avaliou lavouras brasileiras.
Ainda assim, a tolerância à seca não depende de um corte anatômico isolado. Para avaliar materiais em uma região, você considera o ambiente de produção, a ocorrência do déficit e o desempenho em condições comparáveis.
Um resultado experimental orienta perguntas e critérios de seleção, e a validação local continua necessária.
A evidência não sustenta a imposição de restrição hídrica à cultura. Uma adaptação demonstrada sob limitação não recomenda a limitação. O interesse está em identificar combinações de características que sustentem o desempenho quando a água se torna insuficiente.
Fósforo, transporte radial e variação entre raízes
Fósforo e a localização do recurso
Agrupar água, nitrogênio e fósforo em uma só explicação de raízes mais profundas esconde diferenças. O fósforo tem baixa mobilidade no solo em comparação com o nitrato.
A localização do nutriente e o contato das raízes com ele ocupam o centro da interpretação. Saengwilai et al. (2014) descrevem que o enraizamento superficial favorece a aquisição de fósforo e potássio disponíveis na camada superficial.
O artigo sobre arquitetura radicular e eficiência na absorção de nutrientes trata da distribuição das raízes e da disponibilidade de fósforo e nitrogênio.
A economia de manutenção pode ter utilidade mesmo quando o ganho não está em aprofundar. Sustentar comprimento de raiz em uma região explorável também é uma possibilidade funcional. O argumento acompanha a distribuição do recurso, e o melhor desenho radicular varia conforme a limitação.
Postma e Lynch (2011) simularam o benefício do aerênquima sob baixa disponibilidade de fósforo com o modelo funcional-estrutural SimRoot. O modelo explorou a redução dos custos e a remobilização do fósforo das células que morrem.
Nas simulações, o aerênquima aumentou em 70% o crescimento de milho simulado aos 40 dias sob fósforo subótimo, valor descrito por Saengwilai et al. (2014). Esse resultado é suporte teórico quantitativo e difere de um ensaio de produtividade em lavouras.
Um modelo explicita hipóteses e permite examinar suas consequências. A natureza da evidência, simulação ou experimento, deve acompanhar o número. Um resultado simulado não muda de categoria ao virar gráfico ou recomendação técnica.
Compensação entre economia de tecido e transporte de nutrientes
Toda raiz alcança recursos, absorve e integra esses recursos ao funcionamento da planta. Reduzir tecido vivo pode favorecer uma dessas funções e limitar outra. Por isso, o maior valor de aerênquima nem sempre é o melhor.
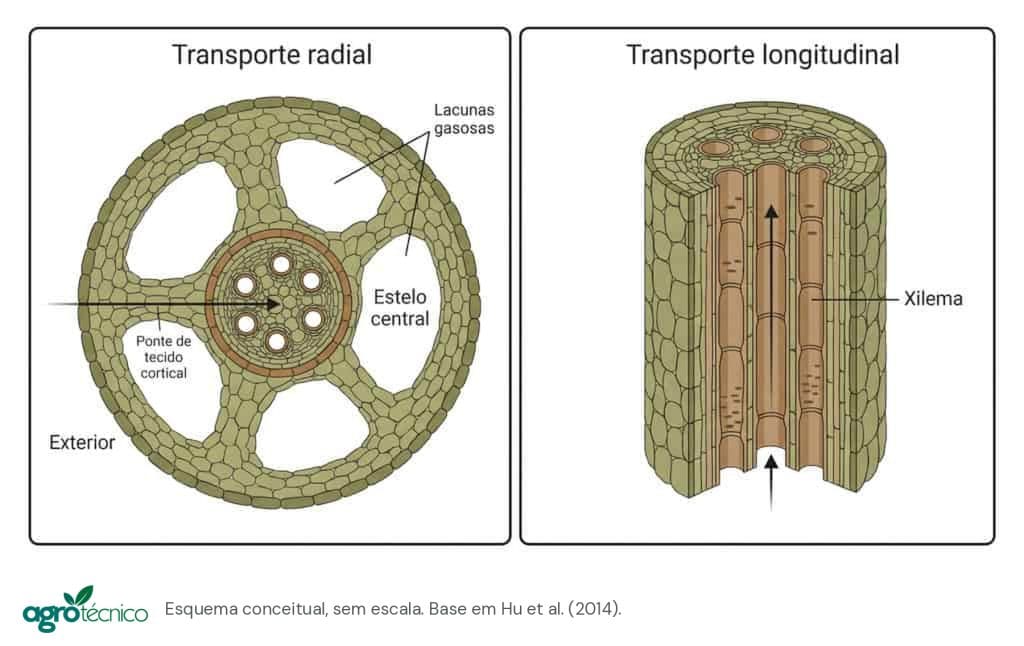
Hu et al. (2014) avaliaram o transporte radial de nutrientes em raízes de milho com níveis diferentes de aerênquima. Saengwilai et al. (2014) resumem que o aerênquima inibe o transporte radial de fosfato e cálcio. A repercussão desses efeitos pequenos no sistema radicular inteiro é incerta.
O transporte radial é o percurso dos recursos dos tecidos externos até o sistema vascular. Ele difere do transporte longitudinal ao longo do xilema. Uma figura anatômica com o cilindro central preservado não demonstra que todos os processos de absorção e transporte radial continuam iguais.
Na Figura 4, o transporte radial cruza o córtex e o transporte longitudinal segue pelo xilema.
Outros custos possíveis do aerênquima, segundo Saengwilai et al. (2014), incluem menor condutividade hidráulica sob baixo fósforo e possível menor colonização por micorrizas. Os autores afirmam que o balanço entre custo e benefício varia com as condições de cultivo.
O estudo de Hu et al. (2014) não estabelece um limiar universal a partir do qual o aerênquima seria prejudicial. Ele impede que uma vantagem respiratória seja confundida com ausência de custos.
O desempenho deve ser medido no conjunto, com a aquisição efetiva de recursos e a resposta da planta. O artigo sobre fatores fisiológicos que limitam a absorção de nutrientes detalha as etapas de absorção e transporte.
Variação do aerênquima entre raízes
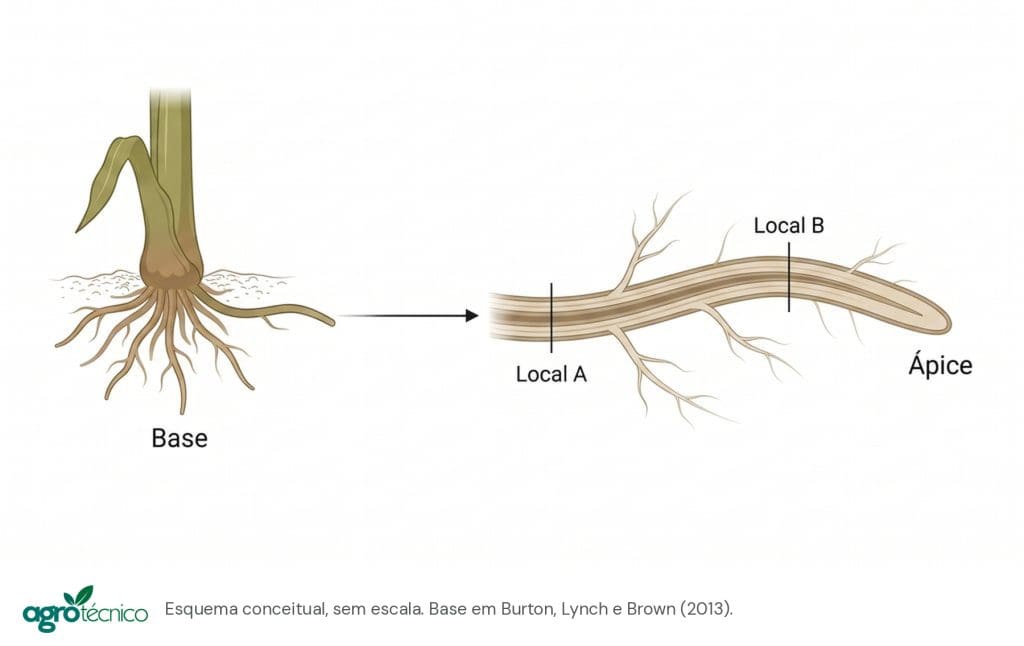
O sistema radicular do milho reúne raízes de origens e idades diferentes. Mesmo dentro de um eixo, posições distintas podem ter estados anatômicos diferentes. Uma amostra retirada ao acaso não descreve toda a planta.
Burton, Lynch e Brown (2013) encontraram variação de aerênquima entre classes de raízes e entre posições ao longo dos eixos. Havia também diferenças entre genótipos em locais correspondentes de amostragem.
Segundo Burton et al. (2013), as raízes coroa do segundo verticilo representam a distribuição do aerênquima no sistema radicular. Saengwilai et al. (2014) classificaram os genótipos por essa posição.
A padronização é condição básica para interpretar comparações anatômicas. Comparar um segmento mais velho de uma classe radicular com outro mais jovem de classe diferente mistura fatores.
Mesmo com cortes tecnicamente bons, a diferença observada não se atribui com segurança ao material genético ou ao tratamento de interesse.
Por isso, você registra qual raiz foi coletada, a posição de inserção, o local do corte e a idade ou o estádio da planta. Esse registro permite saber se duas amostras respondem à mesma pergunta.
Dois locais de coleta em uma mesma raiz aparecem na Figura 5.
A fotografia do corte deve permitir reconhecer os tecidos e distinguir lacunas biológicas de perdas durante o preparo. Uma área rompida pelo procedimento não é aerênquima só porque aparece vazia. A qualidade da imagem e da amostragem determina a qualidade da conclusão.
Aplicação na avaliação de raízes e na comparação de híbridos
Planejamento do ensaio e da coleta
Para quem conduz avaliações agronômicas, o primeiro efeito dessa discussão é metodológico. Antes de escolher a variável, você define o que pretende demonstrar. Maior crescimento radicular, melhor distribuição no perfil e maior aquisição de recursos são perguntas relacionadas e diferentes.
Se a pergunta é crescimento, comprimento e massa dão respostas complementares. Se é distribuição, a avaliação deve preservar a informação de profundidade. Se é aquisição, as medidas devem aproximar-se do recurso que a planta obteve de fato.
Considere duas avaliações hipotéticas. Na primeira, as raízes são retiradas de um volume superficial de solo e pesadas. Na segunda, as amostras são separadas por camadas, o que permite examinar a distribuição do comprimento.
A primeira avaliação descreve uma diferença na massa recuperada naquela região, e a segunda ajuda a identificar diferenças espaciais. Nenhuma delas, sozinha, demonstra que o aerênquima causou a resposta. Escolher uma medida por conveniência e usá-la para todas essas conclusões enfraquece o ensaio.
A recuperação das raízes merece atenção. Sistemas finos podem sofrer perdas durante a escavação e a lavagem. Se os procedimentos diferem entre parcelas ou materiais, parte da diferença final vem da coleta. A padronização começa antes da análise das imagens e continua na interpretação dos resultados.
Quando a anatomia não é o objetivo central, cortes microscópicos não precisam entrar no ensaio. Medir bem as variáveis que respondem à pergunta vale mais do que acumular indicadores sem relação com a hipótese.
Quando a anatomia é objetivo do ensaio, estabeleça antes o procedimento de coleta e processamento, com apoio especializado. É útil separar a observação da explicação.
A frase “o tratamento apresentou maior comprimento na camada avaliada” descreve um resultado. A frase “o tratamento reduziu o custo respiratório por formar aerênquima” acrescenta um mecanismo que precisa de demonstração própria. A primeira pode estar correta mesmo quando a segunda permanece desconhecida.
Um resultado tem mérito quando comunica com precisão o que foi medido e até onde a evidência permite avançar. Essa disciplina vale para relatórios, materiais de campo e conversas sobre híbridos ou tecnologias.
Comparação de híbridos
A anatomia radicular ajuda a compreender diferenças entre plantas. Ela não oferece um atalho para escolher híbridos. A decisão agronômica integra desempenho, estabilidade, condições de cultivo e demais características do material. Um atributo promissor não substitui a avaliação do conjunto.
Uma aplicação responsável é qualificar a conversa sobre adaptação. Se um material tem bom desempenho sob determinada limitação, investigar sua anatomia ajuda a construir uma explicação. Selecionar primeiro uma imagem favorável e usá-la depois como justificativa de superioridade inverte a lógica da avaliação.
Duas raízes visualmente semelhantes podem ter custos diferentes, porque a aparência externa não informa o custo respiratório. Raízes com massas diferentes também não se ordenam automaticamente em uma escala de eficiência. O critério depende da função, das condições de cultivo e do desempenho observado.
Para equipes de fenotipagem e melhoramento, o tema reforça a necessidade de aproximar medidas anatômicas e funcionais. Para consultores e produtores, o ganho imediato é reconhecer os limites dos indicadores usuais. Você usa esse conhecimento para qualificar perguntas, sem criar tarefas de rotina na propriedade.
O que o aerênquima não permite recomendar
A presença de uma adaptação sob baixa disponibilidade de nutrientes não justifica reduzir a oferta nutricional para induzi-la. Um processo relacionado à seca não torna a falta de água uma ferramenta de manejo.
Os estudos discutidos não permitem atribuir a um fertilizante, inoculante ou bioestimulante a capacidade de produzir esse benefício. Um produto é avaliado pelas respostas demonstradas.
Para associá-lo ao aerênquima e ao custo metabólico, é necessário medir essas etapas e estabelecer relação compatível com o desenho experimental.
O mesmo vale para uma fotografia de raízes depois de uma aplicação. Uma amostra mais volumosa não informa quanto aerênquima existe, quanto a raiz respira nem qual recurso foi adquirido a mais. A fotografia documenta uma condição. Ela não comprova processos que não mostra.
No campo, você mantém as condições que permitem o crescimento e o funcionamento da raiz. Conhecer uma adaptação anatômica não substitui o diagnóstico físico, químico e hídrico do solo. A fisiologia torna essa interpretação mais precisa e orienta as perguntas feitas diante dos resultados.
Conclusão
O aerênquima cortical do milho mostra que a relação entre tamanho e custo da raiz é menos direta do que parece. Nos dados de Saengwilai et al. (2014), linhagens com mais aerênquima sustentaram mais comprimento de raiz com menor respiração por centímetro.
Quando permite explorar regiões úteis do solo e manter a aquisição de recursos, essa organização se associa a melhor desempenho nas condições estudadas. O caminho entre o corte microscópico e a lavoura tem etapas que precisam de demonstração.
Menos córtex vivo não prova maior absorção. Menor respiração por centímetro não prova, sozinha, maior produtividade. Cada conclusão pede uma medida compatível.
Para avaliar raízes com rigor, você define a pergunta, registra a origem da amostra e combina variáveis de estrutura e função. Em análises anatômicas, compare materiais equivalentes em classe radicular, idade e posição de coleta. Ao comunicar o resultado, mantenha a condição experimental junto ao número.
O volume visto ao retirar a planta do solo deixa de ser o critério exclusivo para julgar a raiz. O julgamento inclui a profundidade alcançada, o recurso adquirido e o custo que a planta assume para manter essa exploração.
Se você acompanha ensaios de raiz, compartilhe nos comentários como registra a classe e a posição da amostra.
Referências
BURTON, A. L.; LYNCH, J. P.; BROWN, K. M. Spatial distribution and phenotypic variation in root cortical aerenchyma of maize (Zea mays L.). Plant and Soil, v. 367, n. 1–2, p. 263–274, 2013. Disponível em: https://doi.org/10.1007/s11104-012-1453-7.
CHIMUNGU, J. G.; MALIRO, M. F. A.; NALIVATA, P. C.; KANYAMA-PHIRI, G.; BROWN, K. M.; LYNCH, J. P. Utility of root cortical aerenchyma under water limited conditions in tropical maize (Zea mays L.). Field Crops Research, v. 171, p. 86–98, 2015. Disponível em: https://doi.org/10.1016/j.fcr.2014.10.009.
FAN, M.; ZHU, J.; RICHARDS, C.; BROWN, K. M.; LYNCH, J. P. Physiological roles for aerenchyma in phosphorus-stressed roots. Functional Plant Biology, v. 30, n. 5, p. 493–506, 2003. Disponível em: https://doi.org/10.1071/FP03046.
HU, B.; HENRY, A.; BROWN, K. M.; LYNCH, J. P. Root cortical aerenchyma inhibits radial nutrient transport in maize (Zea mays). Annals of Botany, v. 113, n. 1, p. 181–189, 2014. Disponível em: https://doi.org/10.1093/aob/mct259.
POSTMA, J. A.; LYNCH, J. P. Theoretical evidence for the functional benefit of root cortical aerenchyma in soils with low phosphorus availability. Annals of Botany, v. 107, n. 5, p. 829–841, 2011. Disponível em: https://doi.org/10.1093/aob/mcq199.
SAENGWILAI, P.; NORD, E. A.; CHIMUNGU, J. G.; BROWN, K. M.; LYNCH, J. P. Root cortical aerenchyma enhances nitrogen acquisition from low-nitrogen soils in maize. Plant Physiology, v. 166, n. 2, p. 726–735, 2014. Disponível em: https://doi.org/10.1104/pp.114.241711.
YAN, J.; ZHANG, W.; TIAN, Q.; SONG, J.; HOU, Y.; LI, H.; CHENG, S.; YANG, F.; CAI, H.; WANG, Y.; CHEN, Z. Genetic basis of nitrogen-deficiency-induced root cortical aerenchyma in maize revealed by GWAS and transcriptome analysis. Plants, v. 15, n. 1, art. 20, 2026. Disponível em: https://doi.org/10.3390/plants15010020.
ZHU, J.; BROWN, K. M.; LYNCH, J. P. Root cortical aerenchyma improves the drought tolerance of maize (Zea mays L.). Plant, Cell & Environment, v. 33, n. 5, p. 740–749, 2010. Disponível em: https://doi.org/10.1111/j.1365-3040.2009.02099.x.
Deyvid Bueno
Fundador do Agrotécnico.com.br
Gerente de Produtos · ICL América do Sul | Gestão de Produtos (Business Behavior Institute) | MBA PUCRS | FAZU | UFMT | IFRO
0 Comentários