
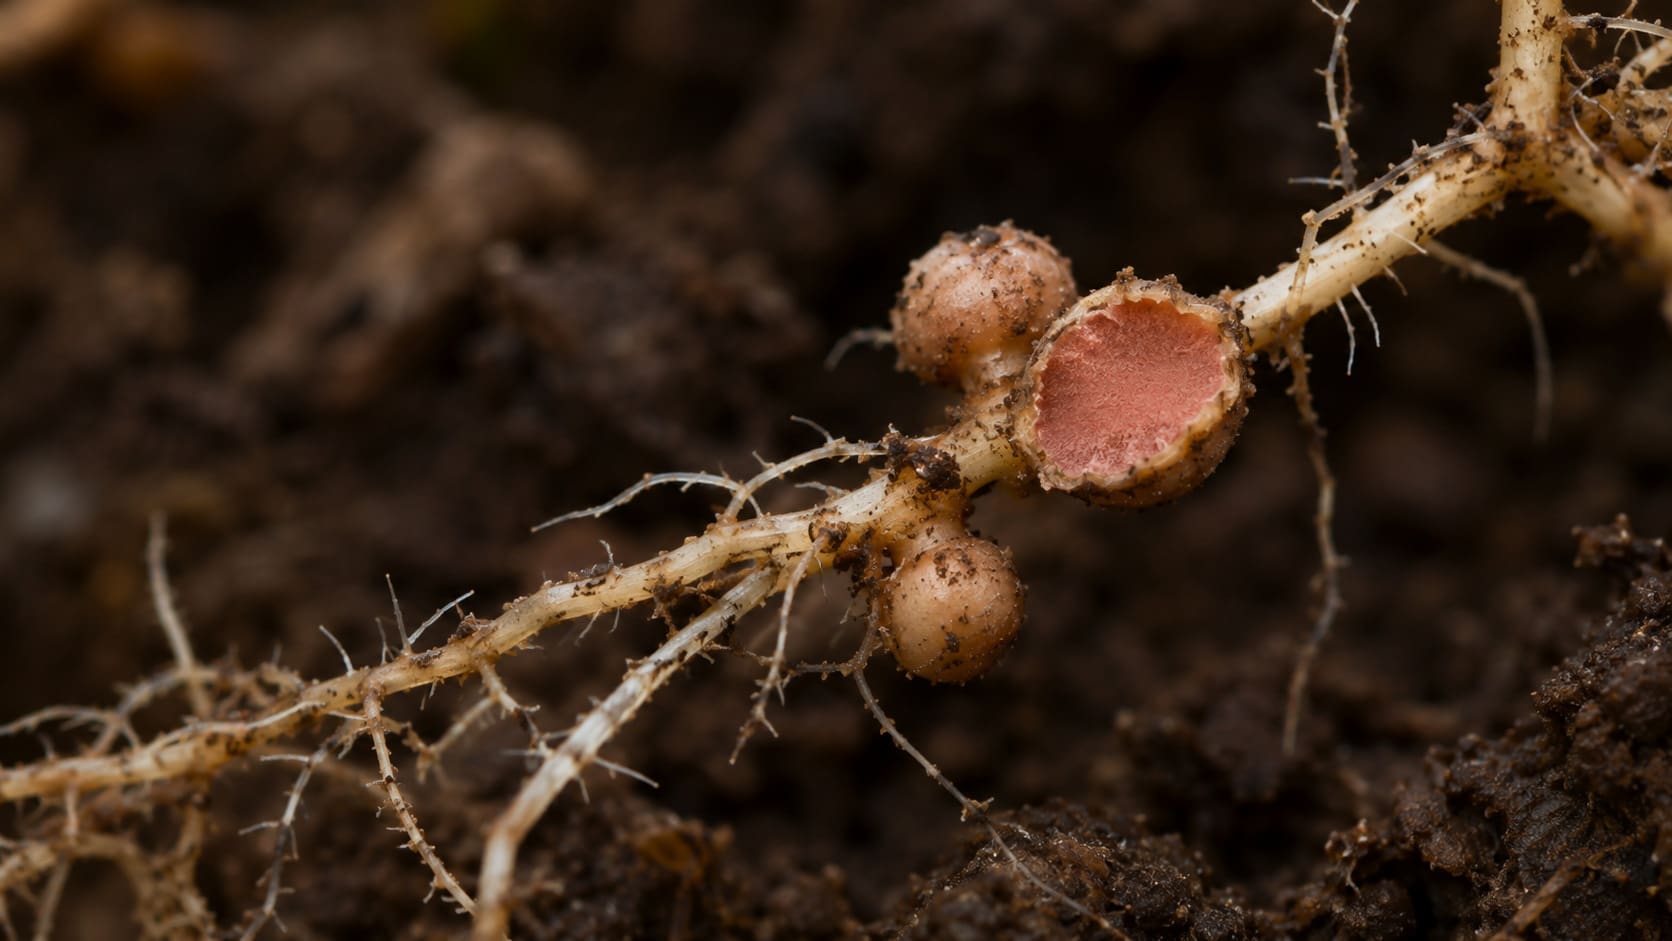
Um nódulo de soja com interior rosado indica a presença de leghemoglobina. Essa cor, porém, não mede a fixação biológica de nitrogênio.
A nitrogenase, enzima que reduz o N₂ a amônia, perde atividade quando o oxigênio livre sobe acima de certo limite. Weisz e Sinclair (1987) sugeriram que o nódulo ajusta a entrada desse gás conforme a oferta externa.
Ao reduzir o oxigênio externo para uma fração volumétrica de 10%, esses autores registraram aumento médio de 63% na permeabilidade dos nódulos. A aparência do nódulo não descreve sozinha o suprimento de oxigênio que chega às bactérias.
A demanda por nitrogênio é alta. Segundo Hungria, Campo e Mendes (2007), da Embrapa Soja (Londrina, PR), são necessários cerca de 80 kg de N por 1.000 kg de grãos. Uma produtividade de 3.000 kg ha−1 implica 240 kg de N ha−1.
Em um talhão com plantas menos vigorosas, você vê o nódulo rosado, mas ainda não sabe quanto ele fixa. Segundo Preisig et al. (1996), uma hipótese de longa data sustenta que os bacteroides lidam com 10 a 20 nM de O₂ livre.
Este artigo descreve o caminho do oxigênio desde a raiz até o bacteroide. Examina a leghemoglobina, a resistência à difusão no córtex e os efeitos do encharcamento e da seca sobre a fixação. O texto inclui ensaios conduzidos em Londrina (PR), Campinas (SP) e Piracicaba (SP). A última seção indica quais observações de campo ajudam a separar as causas do baixo vigor.
Fixação biológica de nitrogênio exige energia o tempo todo
A fixação biológica de nitrogênio começa quando os bacteroides reduzem o N₂ a amônia. Eles são formas diferenciadas de bactérias que vivem dentro das células do nódulo.Para a soja aproveitar esse nitrogênio, a reação precisa ser catalisada pela nitrogenase. Ela depende de um fornecimento contínuo de elétrons e de ATP.
Os elétrons participam da redução do N₂. O ATP sustenta as etapas de transferência desses elétrons no complexo enzimático. A planta incorpora o nitrogênio reduzido em compostos orgânicos. Parte da energia vem da respiração dos bacteroides. A soja fornece carbono derivado da fotossíntese, e o metabolismo vegetal transforma esse carbono em formas que os bacteroides usam.
A oxidação desses substratos alimenta a cadeia respiratória, na qual o oxigênio é o aceptor final de elétrons. A respiração sustenta a produção de ATP, e a nitrogenase depende desse suprimento. Essa simbiose tem custo energético para a planta. Segundo Hungria et al. (2007), o gasto da soja na fixação pode ser maior que o da absorção de nitrogênio de fertilizante.
A pesquisa brasileira selecionou cultivares e estirpes de Bradyrhizobium capazes de suprir a cultura sem adubo nitrogenado. Os solos do país costumam fornecer apenas 10 a 30 kg de N ha−1, segundo os mesmos autores. A dificuldade está nos centros metálicos da nitrogenase, sensíveis ao oxigênio. O bacteroide precisa manter respiração ativa mesmo quando o O₂ livre ao redor é muito baixo.
Preisig et al. (1996) identificaram, em Bradyrhizobium japonicum, uma oxidase respiratória de alta afinidade por O₂, do tipo cbb₃. Essa enzima ajuda a explicar como a cadeia respiratória funciona nessa condição. A região funcional do nódulo é microóxica. Há oxigênio disponível para a respiração, mas a concentração livre permanece baixa.
Para ver a diferença de escala, a Figura 1 compara três concentrações de O₂. A solução nutritiva aerada de Thomas et al. (2005) tinha 6,6 mg L−1, ou cerca de 206 µM. Depois do alagamento, o valor caiu para 0,6 a 0,9 mg L−1.
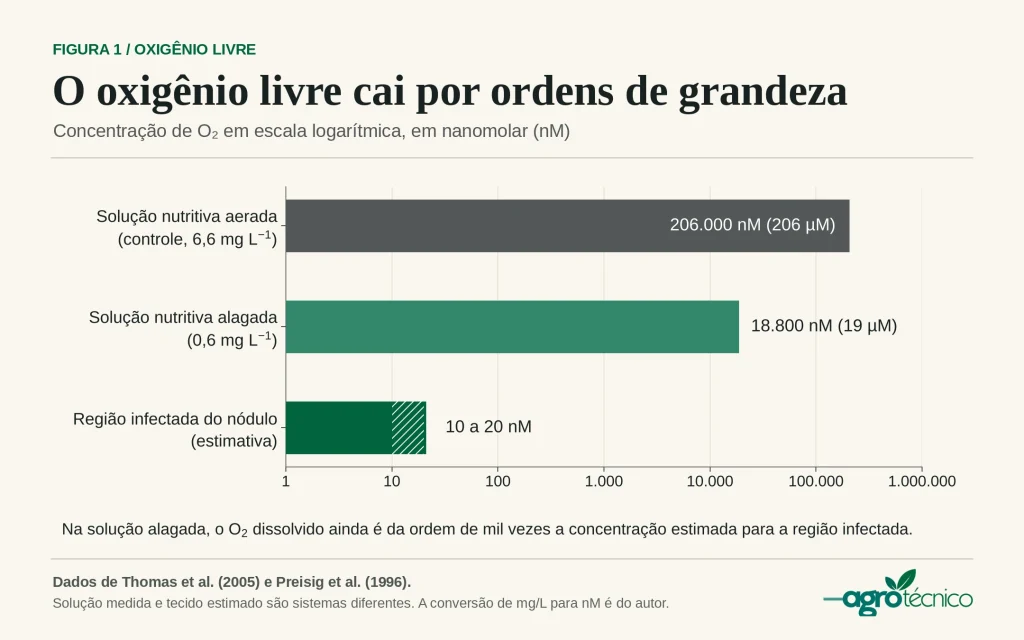
Mesmo o valor mais baixo, 0,6 mg L−1, equivale a cerca de 19 µM. Isso é da ordem de mil vezes a estimativa de 10 a 20 nM para a região infectada. A comparação mistura um valor medido em solução com uma estimativa para o tecido. Ela mostra que um meio já hipóxico tem muito mais O₂ livre que a região funcional do nódulo.
Concentração e fluxo descrevem coisas diferentes. A concentração livre informa quanto O₂ está disponível em determinado local e momento. O fluxo informa quanto O₂ chega a esse local ao longo do tempo.
Um tecido que recebe e consome oxigênio continuamente pode manter baixa a concentração livre, desde que suprimento e consumo sejam compatíveis. No nódulo, o córtex influencia o suprimento. A leghemoglobina facilita a movimentação do O₂ dentro do tecido infectado, e a respiração responde por grande parte do consumo.
A resistência à difusão no córtex do nódulo
No corte de um nódulo de soja, a região central rosada costuma chamar a atenção primeiro. É ali que ficam as células infectadas, entremeadas por células não infectadas.
Ao redor fica o córtex, onde passam os feixes vasculares. O oxigênio vindo de fora atravessa esses tecidos periféricos antes de chegar à região de maior demanda respiratória. A Figura 2 mostra esse trajeto, do solo ao centro do nódulo.

A expressão barreira à difusão descreve a resistência à passagem dos gases pelos tecidos. Essa resistência pode variar.
Weisz e Sinclair (1987) trabalharam com plantas intactas de soja cultivadas em hidroponia. Alteraram o oxigênio ao redor das raízes e mediram, repetidas vezes, a permeabilidade do nódulo, a redução de acetileno e a respiração. Depois de cada mudança, a nitrogenase e a respiração oscilaram por pouco tempo e voltaram às taxas da concentração original de O₂. A permeabilidade, ao contrário, mudou bastante.
Com o O₂ externo reduzido para uma fração volumétrica de 10%, a permeabilidade média aumentou 63%. Com o oxigênio externo elevado, a permeabilidade diminuiu. A direção das respostas é coerente com um órgão capaz de ajustar a entrada de gás conforme a oferta externa. Os 63% representam a resposta média naquele tratamento experimental.
Hunt et al. (1987) acompanharam as trocas gasosas de nódulos de soja expostos a pressões parciais de O₂ de 5 a 100%. Nos nódulos ligados à planta, aumentos em degraus do oxigênio externo provocaram queda inicial na liberação de hidrogênio e de CO₂.
Esses gases foram usados como indicadores da atividade da nitrogenase e da respiração, respectivamente. Os sinais se recuperaram em 10 a 60 minutos, e a recuperação foi mais rápida quando o O₂ inicial era mais alto.
As mudanças de respiração, sozinhas, não explicaram o ajuste observado. Isso reforçou a interpretação de uma resistência difusiva variável, que responde em minutos à pressão de O₂. O mesmo estudo comparou nódulos ligados à planta com nódulos excisados e fatiados. A Figura 3 mostra as quedas de 45% e de 78% na atividade específica total da nitrogenase, medida a 20% de O₂.
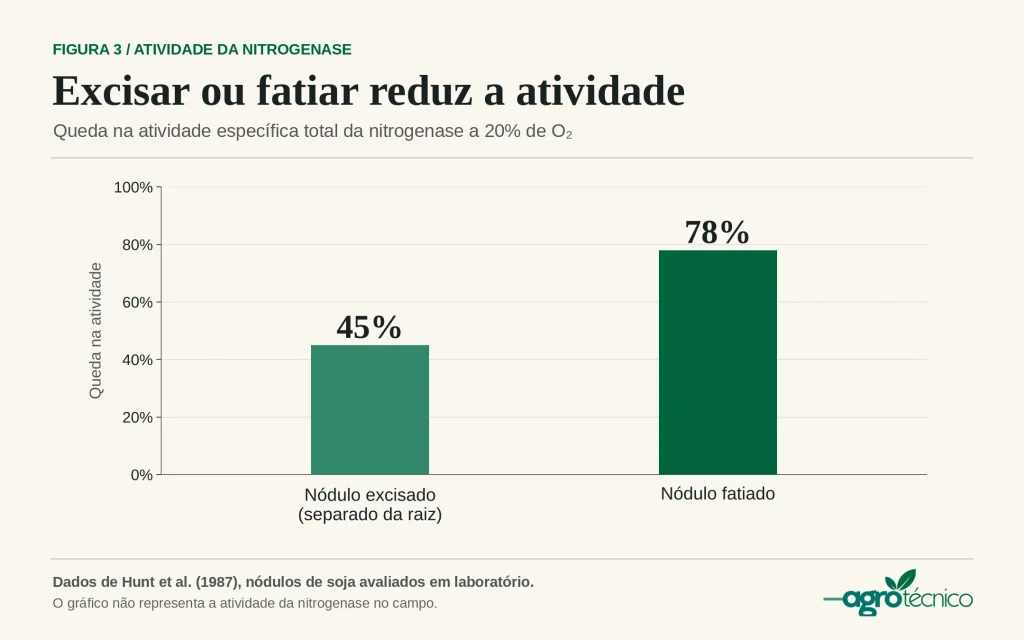
Nos nódulos excisados e fatiados, em mistura de argônio e O₂, novos aumentos de 10% no O₂ não provocaram queda transitória. A atividade atingiu novos estados estacionários, com ótimos perto de 60% de O₂. Hunt et al. interpretaram o padrão como aumento da resistência difusiva do córtex após a excisão e o fatiamento.
Para você, que abre nódulos na visita ao talhão, a conclusão é direta. O nódulo aberto mostra cor e anatomia. A atividade que ele tinha antes do corte exige plantas intactas e medidas contínuas das trocas gasosas, como mostra o próprio estudo.
A leghemoglobina e a organização celular do nódulo
A leghemoglobina ajuda a entregar oxigênio onde ele é consumido
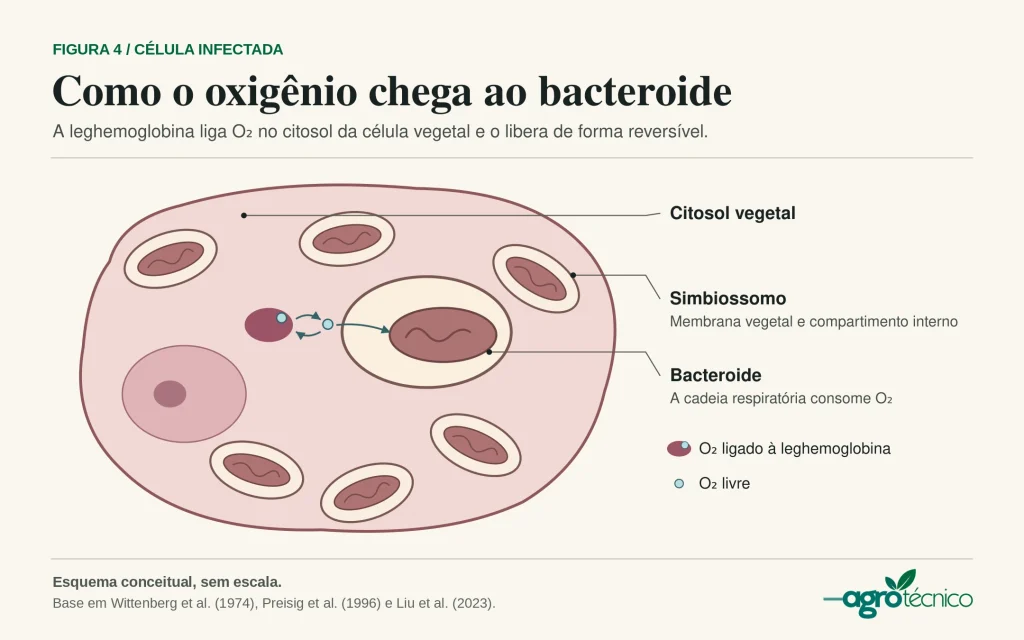
Depois de atravessar o córtex, o oxigênio ainda precisa se deslocar pelo tecido até os sítios respiratórios. A leghemoglobina, proteína presente no citosol das células vegetais infectadas, liga O₂ de forma reversível.
Parte do oxigênio fica temporariamente ligada à proteína e volta à fração livre à medida que o gás é consumido. Essa ligação favorece a entrega de O₂ ao sistema respiratório enquanto a concentração livre se mantém baixa. Dentro da célula vegetal infectada, os bacteroides ficam alojados em simbiossomos, compartimentos delimitados por uma membrana de origem vegetal. A leghemoglobina está no citosol, do lado de fora dessa membrana.
O oxigênio se desprende da proteína e difunde-se até o ponto de consumo. Segundo Wittenberg et al. (1974) e Preisig et al. (1996), a proteína vegetal favorece a entrega, e a cadeia respiratória bacteriana consome o gás.
Wittenberg et al. (1974) adicionaram oxileghemoglobina, a forma ligada ao O₂, a uma suspensão de bacteroides isolados de nódulos de soja. Nessas condições, o consumo de oxigênio e a atividade da nitrogenase aumentaram.
A atividade foi avaliada por redução de acetileno e pela incorporação de nitrogênio marcado com ¹⁵N em amônia. A combinação de medidas indicou que a proteína facilitava o fornecimento de O₂ à respiração, com efeito sobre a nitrogenase. O trabalho avaliou o papel da proteína separadamente do córtex e dos demais tecidos. A Figura 4 resume essa entrega de O₂ dentro da célula infectada.
As duas escalas se complementam. O estudo com bacteroides esclarece a entrega de oxigênio perto dos sítios de consumo.
Os ensaios com nódulos intactos mostram que a chegada desse gás já é regulada na periferia do órgão. Um córtex com maior resistência pode restringir a quantidade que chega ao tecido.
Um tecido com capacidade respiratória reduzida pode ter dificuldade para aproveitar o oxigênio disponível.
A região rosada abriga células com trabalhos diferentes
A olho nu, a região central parece mais homogênea do que é. Em 2023, dois atlas transcriptômicos de soja ofereceram uma visão mais detalhada desse tecido.
Liu et al. (2023) combinaram expressão gênica de núcleos individuais com informação espacial. Na região central, identificaram subgrupos de células não infectadas e um estado de transição entre células infectadas.
Sun et al. (2023) mapearam tipos celulares de raízes e nódulos. Associaram cada etapa da síntese de ureídeos, compostos que transportam nitrogênio na planta, a células específicas.
A redução do N₂ pelos bacteroides é apenas uma etapa. A assimilação e o processamento do nitrogênio envolvem outras reações e compartimentos.
A expressão gênica ajuda a identificar onde estão essas especializações e como mudam com a maturação. Para investigar a entrada de O₂ ou a resposta imediata da nitrogenase, são necessárias outras medidas, como as trocas gasosas.
Cervantes-Pérez et al. (2024) encontraram, em nódulos maduros, subpopulações de células infectadas com perfis associados à fixação e outras com perfis associados à senescência.
Hungria et al. (2007) descrevem a cor como indicador de estado. Nódulos em plena atividade têm interior rosa intenso. Nódulos senescentes ficam esverdeados ou marrons, e os formados por bactérias ineficientes são brancos ou esverdeados desde a formação.
Ao abrir um nódulo, você vê o tecido em conjunto. A cor interna indica o desenvolvimento do órgão, mas o papel de cada região depende do estado das células e do metabolismo naquele momento.
Encharcamento e a queda na oferta externa de oxigênio
O mesmo poro, com ar ou com água
Imagine dois poros de tamanho semelhante no solo. Um contém ar e está conectado a outros poros com ar. O outro está preenchido por água.
No primeiro, o oxigênio se difunde pela fase gasosa até as proximidades da raiz. No segundo, parte do caminho depende da difusão pela água, muito mais lenta.
Segundo Colmer (2003), a difusividade dos gases na água é cerca de 10.000 vezes menor que no ar. A Figura 5 compara o mesmo poro nas duas condições.
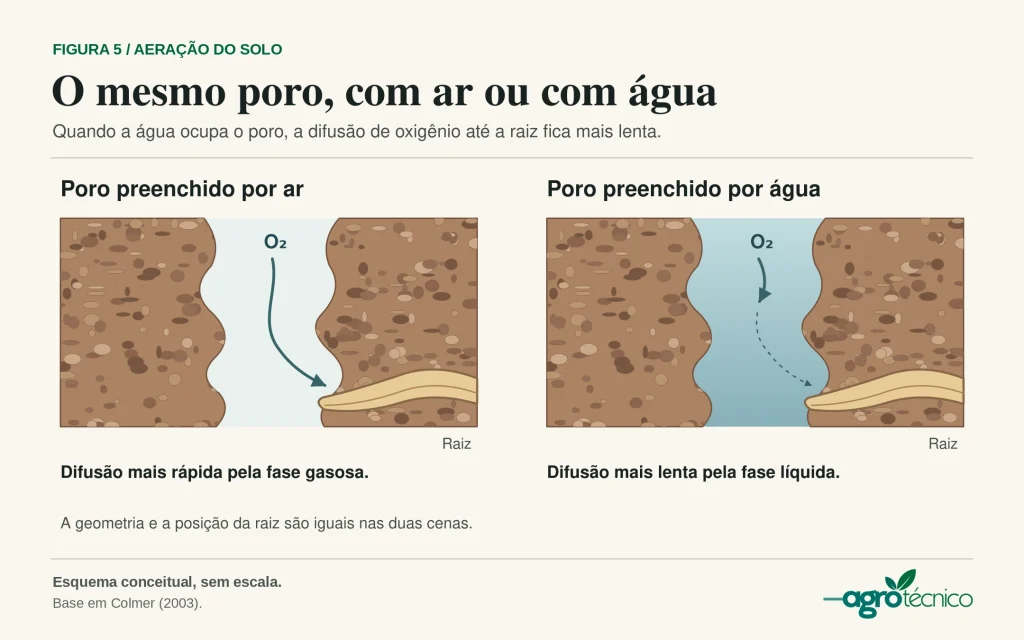
Quando a saturação ocupa uma fração elevada dos poros conectados, a reposição de O₂ pode ficar aquém do consumo.
O consumo inclui o sistema radicular e os organismos do solo. A superfície do nódulo passa a receber menos oxigênio.
Em vasos com solução nutritiva, Thomas et al. (2005) mediram essa queda. O O₂ dissolvido caiu de 6,6 para 0,9 mg L−1 no primeiro dia. Depois, ficou entre 0,6 e 0,8 mg L−1 até o décimo dia.
Em solo saturado, a oferta de oxigênio ao nódulo depende da água e da estrutura dos poros. Por isso, a mesma soja pode se comportar de modo diferente em trechos vizinhos do talhão.
Aerênquima e recuperação parcial no alagamento
Thomas et al. (2005), da Universidade Estadual de Campinas (SP), alagaram raízes de soja em casa de vegetação. Usaram a cultivar FT-Abyara, inoculada com a estirpe SEMIA 5019, em vasos de 2 L com vermiculita.
O aerênquima é um tecido com espaços cheios de gás, formado em raízes, caules e nódulos sob hipóxia. Nos nódulos alagados, ele surgiu de células geradas pelo felogênio.
Nódulos situados a mais de 7 a 8 cm de profundidade praticamente não formaram aerênquima. A profundidade dos nódulos influenciou a resposta ao alagamento nesse ensaio.
No segundo ensaio, as plantas foram alagadas no florescimento por 10 dias. A porosidade dos nódulos subiu de 0,4% para 1,9% no primeiro dia e ficou perto de 2% até o fim. A da raiz pivotante passou de 4,7% no quarto dia para 22,0% no sétimo.
A Figura 6 acompanha o transporte de ureídeos no xilema, produtos da fixação. No primeiro dia, a concentração caiu de 4,2 para 0,2 µmol mL−1.
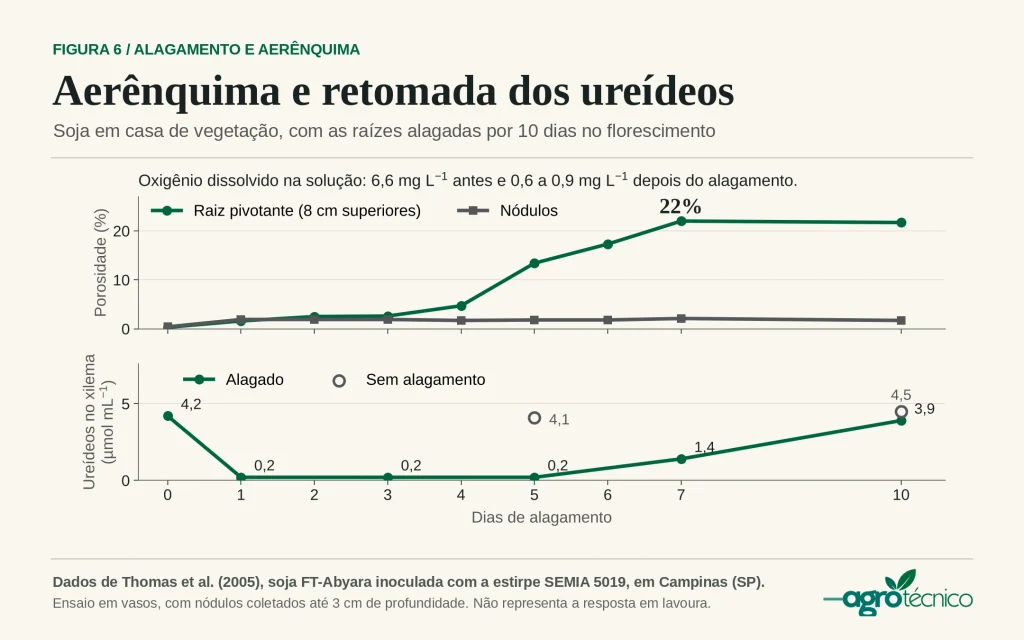
A concentração subiu a 1,4 µmol mL−1 no sétimo dia e chegou a 3,9 no décimo, perto dos 4,1 a 4,5 das plantas sem alagamento.
A alanina, produto do metabolismo anaeróbio, subiu de 0,4% para 34,0% dos aminoácidos da seiva no primeiro dia. Depois caiu, sem voltar ao valor inicial.
Thomas et al. associaram a retomada do transporte de ureídeos ao aumento da porosidade da raiz. O ensaio mostra coincidência no tempo e não mediu o oxigênio dentro do nódulo.
Se a soja apresenta menor vigor nas posições que acumularam água, faz sentido examinar a umidade do solo na profundidade das raízes e dos nódulos.
Um ponto que já drenou no dia da visita pode ter passado tempo suficiente saturado para afetar as raízes. Por isso, o histórico recente da área orienta o diagnóstico.
O aerênquima também aparece em milho, com outra função no custo respiratório da raiz, como descreve o artigo sobre aerênquima cortical do milho.
Seca e a capacidade metabólica do nódulo
Na seca, oferecer mais oxigênio recupera pouco da atividade
Quando a soja está sob déficit hídrico e a fixação cai, uma hipótese é que o nódulo restrinja demais a entrada de O₂.
Se essa fosse a limitação dominante, elevar o oxigênio externo aliviaria boa parte da queda, desde que o tecido ainda tivesse capacidade metabólica para responder.
Del Castillo et al. (1994) usaram essa lógica em nódulos de soja sob seca. Compararam a resposta ao aumento de O₂ com a de plantas sem a parte aérea. Esse tratamento induz limitação de oxigênio no metabolismo nodular.
Foram impostas secas leve, moderada e severa, com diferentes substratos de cultivo e períodos sem irrigação. A atividade da nitrogenase caiu em todos os tratamentos. Sob seca, a queda acompanhou potenciais hídricos mais negativos do nódulo.
Nos nódulos das plantas sob seca, elevar o O₂ externo recuperou pouco da atividade da nitrogenase. Nas plantas sem parte aérea, o mesmo aumento estimulou muito mais a atividade.
Os resultados apontam para queda da capacidade metabólica do nódulo, expressa em menor respiração ou menor atividade máxima da nitrogenase nas condições estudadas.
Eles também consideraram que a mudança de permeabilidade poderia ser consequência da alteração metabólica. Se o tecido consome menos O₂, muda o equilíbrio entre suprimento e consumo.
Um ensaio em Piracicaba com seca e temperatura do solo
Cabral et al. (2026), da Esalq/USP, em Piracicaba (SP), avaliaram a fixação em soja sob déficit hídrico e aquecimento do solo. O ensaio ocorreu em casa de vegetação, de 15 de outubro a 3 de dezembro de 2024.
Os vasos de PVC, de 5,3 L, ficaram com o solo a 24 °C ou a 36 °C. As plantas da cultivar NEO 531 I2X receberam Bradyrhizobium japonicum, estirpes SEMIA 5079 e 5080.
No tratamento sem déficit, a umidade ficou em cerca de 80% da capacidade de campo. No déficit hídrico, as plantas receberam 70% da lâmina aplicada às demais, desde V2 até o estádio R3.
O déficit foi o principal fator limitante. Reduziu o crescimento, o número e a massa de nódulos e o acúmulo de ureídeos. A relação entre o N da parte aérea e a massa de nódulos foi maior sob déficit nas duas temperaturas.
Com água suficiente, o solo a 36 °C aumentou a massa de nódulos e o índice integrado de fixação, apesar do menor número de nódulos. O maior número ocorreu a 24 °C, sem déficit.
O ensaio não mediu a difusão de O₂. Os dados mostram que, sob déficit, a perda de fixação acompanhou a perda de massa e de número de nódulos. O rendimento de N por massa de nódulo não caiu.
Esse padrão é compatível com a leitura de del Castillo et al. (1994) de que a seca reduz a capacidade do tecido. Os dois estudos usam métodos diferentes e não permitem afirmar o mecanismo.
Em campo, Hungria et al. (2007) apontam a temperatura elevada e o estresse hídrico como os principais limites ambientais da fixação nos trópicos. Em solo descoberto, os primeiros 5 cm podem passar de 40 °C.
A cobertura do plantio direto reduz a temperatura do solo e retém a umidade por mais tempo, segundo os mesmos autores.
Num trecho sob seca, a investigação precisa incluir o estado hídrico da planta e o funcionamento metabólico do nódulo. Os mecanismos que mantêm o metabolismo ativo sob estresse abiótico estão descritos em resiliência metabólica nas plantas.
A mesma observação, uma planta com baixo vigor e nódulos presentes, pode surgir de processos distintos. Temperatura, oferta de carbono, nitrogênio mineral disponível e condição do sistema radicular também fazem parte desse contexto.
A ordem dos acontecimentos importa para entender onde a limitação começou. Num trecho saturado, você investiga a reposição física de oxigênio na zona radicular.
O que o nódulo rosado permite concluir na visita

Ao abrir um nódulo rosado, você encontra um sinal compatível com a presença de leghemoglobina. Ele indica ainda o desenvolvimento da região infectada.
Hungria et al. (2007) descrevem a sequência em campo. Os primeiros nódulos aparecem de 5 a 8 dias após a emergência.
Aos 10 a 12 dias, quatro a oito nódulos de 1 a 2 mm ocupam a coroa da raiz. Essa região mede cerca de 4 cm por 3 cm.
No florescimento, uma planta bem nodulada tem entre 15 e 30 nódulos, ou 100 a 200 mg de nódulos secos. Os nódulos de 2 mm ou mais são os de maior capacidade de fixação.
Depois da formação das vagens, a senescência dos nódulos começa por sinal da planta, e o interior passa de rosa a esverdeado ou marrom. Essa mudança é esperada nesse estádio e deve ser comparada entre plantas do mesmo estádio.
Se há vários nódulos, a contagem ajuda a descrever a nodulação. O tamanho e a posição nas raízes completam a observação. Cada característica informa algo sobre o órgão formado.
A taxa de fixação depende também da atividade por unidade de massa e das condições em que o conjunto de nódulos funciona.
Na prática, você pode comparar plantas do mesmo estádio, em pontos com e sem sintomas, sempre que houver áreas comparáveis no talhão.
Retire as plantas com uma pá para preservar as raízes laterais. Observe o vigor da parte aérea, a profundidade e a distribuição das raízes, e a posição e o tamanho dos nódulos. Abra alguns para registrar a coloração interna.
Registre a profundidade dos nódulos, porque Thomas et al. (2005) observaram aerênquima apenas nos mais rasos. Depois, olhe o solo na profundidade em que estavam e relacione o que viu com as chuvas, a irrigação e os períodos secos anteriores.
Se a diferença de vigor coincide com uma faixa que permaneceu saturada, ganha peso a hipótese de restrição radicular por excesso de água. Se coincide com solo mais seco e raízes que exploram pouco volume, o histórico hídrico merece atenção.
Se as condições das raízes e do solo parecem semelhantes, a avaliação pode avançar para outras causas. O histórico nutricional e o padrão dos sintomas ajudam nessa escolha.
Em pesquisa, ensaios de evolução de hidrogênio ou de redução de acetileno acompanham a atividade da nitrogenase em condições definidas. Métodos com ¹⁵N respondem a perguntas sobre incorporação de nitrogênio, conforme o desenho do estudo.
Converter diretamente um resultado de redução de acetileno em quilogramas de nitrogênio fixado por hectare exige calibração e um desenho experimental compatível com essa estimativa.
O corte mostra um tecido que a soja construiu para sustentar a simbiose. Se a planta perdeu vigor apesar dos nódulos rosados, compare a planta e as condições das raízes nos pontos em que o talhão muda.
Essa comparação ajuda a decidir se vale aprofundar a investigação sobre drenagem, déficit hídrico, restrição ao crescimento radicular pela compactação ou outra causa do sintoma.
Para o papel de outros microrganismos na simbiose, veja a co-inoculação de soja com Bradyrhizobium e Azospirillum.
Conclusão
A estimativa para o oxigênio livre na região infectada é de 10 a 20 nM, e o córtex ajusta a entrada do gás. Weisz e Sinclair (1987) registraram aumento de 63% na permeabilidade com o O₂ externo reduzido para 10%.
A leghemoglobina entrega o O₂ aos bacteroides sem elevar a concentração livre. A excisão e o fatiamento reduziram a atividade da nitrogenase em 45% e 78%, segundo Hunt et al. (1987), o que limita o que se mede em nódulos abertos.
No encharcamento, a oferta de O₂ cai fora do nódulo. Segundo Thomas et al. (2005), em Campinas (SP), a porosidade da raiz chegou a 22% no sétimo dia. Os ureídeos no xilema voltaram a 3,9 µmol mL−1 no décimo.
Na seca, a perda de fixação em Piracicaba (SP) acompanhou a perda de massa e de número de nódulos, segundo Cabral et al. (2026).
Os ensaios descritos aqui foram conduzidos em vasos ou em laboratório. A resposta em lavoura depende de solo, cultivar e clima, e este texto não traz medidas de difusão de O₂ obtidas em campo.
Se você já comparou talhões com e sem sintomas, registre os sinais de solo e de raiz antes de definir a causa. Conte nos comentários o que encontrou nos nódulos.
Referências
CABRAL, C. D. et al. Temperature-dependent root responses to water deficit modulate biological nitrogen fixation and rhizosphere dynamics in soybeans. Physiologia Plantarum, v. 178, n. 4, e71029, 2026. Disponível em: https://doi.org/10.1111/ppl.71029
CERVANTES-PÉREZ, S. A. et al. Single-cell transcriptome atlases of soybean root and mature nodule reveal new regulatory programs that control the nodulation process. Plant Communications, v. 5, n. 8, p. 100984, 2024. Disponível em: https://doi.org/10.1016/j.xplc.2024.100984.
COLMER, T. D. Long-distance transport of gases in plants: a perspective on internal aeration and radial oxygen loss from roots. Plant, Cell & Environment, v. 26, n. 1, p. 17-36, 2003. Disponível em: https://doi.org/10.1046/j.1365-3040.2003.00846.x
DEL CASTILLO, D.; HUNT, S.; LAYZELL, D. B. The role of oxygen in the regulation of nitrogenase activity in drought-stressed soybean nodules. Plant Physiology, v. 106, n. 3, p. 949-955, 1994. Disponível em: https://doi.org/10.1104/pp.106.3.949
HUNGRIA, M.; CAMPO, R. J.; MENDES, I. C. A importância do processo de fixação biológica do nitrogênio para a cultura da soja: componente essencial para a competitividade do produto brasileiro. Londrina: Embrapa Soja, 2007. 80 p. (Documentos, 283). Disponível em: https://www.infoteca.cnptia.embrapa.br/infoteca/bitstream/doc/564908/1/bolpd283soja.pdf.
HUNT, S. et al. Steady and nonsteady state gas exchange characteristics of soybean nodules in relation to the oxygen diffusion barrier. Plant Physiology, v. 84, n. 1, p. 164-172, 1987. Disponível em: https://doi.org/10.1104/pp.84.1.164.
LIU, Z. et al. Integrated single-nucleus and spatial transcriptomics captures transitional states in soybean nodule maturation. Nature Plants, v. 9, n. 4, p. 515-524, 2023. Disponível em: https://doi.org/10.1038/s41477-023-01387-z.
PREISIG, O. et al. A high-affinity cbb₃-type cytochrome oxidase terminates the symbiosis-specific respiratory chain of Bradyrhizobium japonicum. Journal of Bacteriology, v. 178, n. 6, p. 1532-1538, 1996. Disponível em: https://doi.org/10.1128/jb.178.6.1532-1538.1996.
SUN, B. et al. A high-resolution transcriptomic atlas depicting nitrogen fixation and nodule development in soybean. Journal of Integrative Plant Biology, v. 65, n. 6, p. 1536-1552, 2023. Disponível em: https://doi.org/10.1111/jipb.13495.
THOMAS, A. L.; GUERREIRO, S. M. C.; SODEK, L. Aerenchyma formation and recovery from hypoxia of the flooded root system of nodulated soybean. Annals of Botany, v. 96, n. 7, p. 1191-1198, 2005. Disponível em: https://doi.org/10.1093/aob/mci272.
WEISZ, P. R.; SINCLAIR, T. R. Regulation of soybean nitrogen fixation in response to rhizosphere oxygen. II. Quantification of nodule gas permeability. Plant Physiology, v. 84, n. 3, p. 906-910, 1987. Disponível em: https://doi.org/10.1104/pp.84.3.906.
WITTENBERG, J. B. et al. Facilitated oxygen diffusion: the role of leghemoglobin in nitrogen fixation by bacteroids isolated from soybean root nodules. Journal of Biological Chemistry, v. 249, n. 13, p. 4057-4066, 1974. Disponível em: https://doi.org/10.1016/S0021-9258(19)42483-6.
0 Comentários